1 引言
合作的演化在自然界[1 5] 和人类社会 [6 9] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41] 以及 PW-Fermi 规则 [42 45] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用.
综合上述因素, 本文构建一个具有异质收益和指数非线性时间成本的双阈值 $N$
2 理论模型
2.1 带异质收益和非线性时间成本的双阈值 $N$
本文考虑一个具有两个阈值 $ M_1 $ $ M_2 $ $ 1\le M_1\le M_2\le N $ ) 的 $ N $ $ C $ ) 与背叛 ($ D $ ) 为其两个策略, 其中这 $ N $ $ i $ $ 0 \leq i \leq N $ ) 个合作者以及 $ N-i $ $ c $ $ b_C $ $ b_D $ $ b_C \geq b_D $ . 这里, 第一个阈值 $ M_1 $ $ i<M_1 $ $ \frac{c}{M_1} $ $ e^{u\left( M_1-i \right)b_D} $ $ u(u\geq 0) $ $ M_2 $ $ M_1\le i\le M_2 $ $ c $ $ \frac{c}{i} $ $ b_C $ $ b_D $ $ le^{u\left( M_1-i \right)b_C}, 0\leqslant l\leqslant 1 $ . 当 $ M_2<i\le N $ [28 ] , 即每个合作者最少需要付出成本 $ \frac{c}{M_2} $ $ b_C $ $ b_D $ $ le^{u\left( M_1-i \right)b_C} $
(2.1) $\begin{equation}\label{eq1} P_{C}\left( i \right)=\begin{cases} -\frac{c}{M_1}-e^{u\left( M_1-i-1 \right)b_D}, ~~ 0\leqslant i\leqslant M_1-2,\\ b_C-\frac{c}{i+1}-\frac{le^{u\left( M_1-i-1 \right)b_C}}{i+1}, ~~ M_1-1\leqslant i\leqslant M_2-2,\\ b_C-\frac{c}{M_2}-\frac{le^{u\left( M_1-i-1 \right)b_C}}{i+1}, ~~ M_2-1\leqslant i\leqslant N-1\\ \end{cases} \end{equation} $
(2.2) $\begin{equation}\label{eq2} P_D\left( i \right)=\begin{cases} -e^{u\left( M_1-i \right)b_D}, ~~ 0\leqslant i\leqslant M_1-1,\\ b_D-\frac{le^{u\left( M_1-i \right)b_C}}{i+1}, ~~ M_1\leqslant i\leqslant N-1.\\ \end{cases}\\ \end{equation}$
以上为同时考虑异质收益及指数非线性时间成本的双阈值 $ N $ 25 ] 中的考虑时间成本下的单阈值 $ N $ 29 ] 中的双阈值 $ N $
2.2 期望收益
令 $ H\left( t \right) $ $ H\left( t<0 \right) =0 $ $ H\left( t\geqslant 0 \right) =1 $
(2.3) $\begin{equation}\label{eq3} \begin{split} \varOmega _C\left( i \right) =& H\left( i+1-M_1 \right)b_C -\left( \frac{c}{M_2}+\frac{le^{u\left( M_1-i-1 \right)b_C}}{i+1} \right) H\left( i+1-M_2 \right) \\ &-\frac{c+le^{u\left( M_1-i-1 \right)b_C}}{i+1}\left[ H\left( i+1-M_1 \right) -H\left( i+1-M_2 \right) \right] \\ & -\left( \frac{c}{M_1}+e^{u\left( M_1-i-1 \right)b_D} \right) H\left( 1-H\left( i+1-M_1 \right) \right), \end{split} \end{equation}$
(2.4) $\begin{equation}\label{eq4} \varOmega _D\left( i \right) =H\left( i-M_1 \right)b_D -\frac{le^{u\left( M_1-i \right)b_C}}{i+1}H\left( i-M_1 \right)-e^{u\left( M_1-i \right)b_D}H\left( 1-H\left( i-M_1 \right) \right). \end{equation}$
在该 $ N $ $ x $ $ 1-x $ . 对于一个合作者或背叛者, 剩下的 $ N-1 $ [51 ] . 因此, 合作者和背叛者的期望收益 $ f_C(x) $ $ f_D(x) $
(2.5) $\begin{align*}\label{eq5} f_C\left( x \right) =&\sum_{i=0}^{N-1}{{N-1 \choose i}x^i\left( 1-x \right) ^{N-1-i}\varOmega _c\left( i \right)} =\sum_{i=0}^{N-1}\left( \begin{array}{c} N-1\\ i\\\end{array} \right) x^i\left( 1-x \right) ^{N-1-i}\\ &\left( \begin{array}{c} H\left( i+1-M_1 \right)b_C -\left( \frac{c}{M_2}+\frac{le^{u\left( M_1-i-1 \right)b_C}}{i+1} \right) H\left( i+1-M_2 \right)\\ -\frac{c+le^{u\left( M_1-i-1 \right)b_C}}{i+1}\left[ H\left( i+1-M_1 \right) -H\left( i+1-M_2 \right) \right]\\ -\left( \frac{c}{M_1}+e^{u\left( M_1-i-1 \right)b_D} \right) H\left( 1-H\left( i+1-M_1 \right) \right)\\\end{array} \right)\\ =&\sum_{i=M_1-1}^{N-1}{{N-1 \choose i} x^i\left( 1-x \right) ^{N-1-i}b_C}\\ &-\sum_{i=M_2-1}^{N-1}{{N-1 \choose i} x^i\left( 1-x \right) ^{N-1-i}\left( \frac{c}{M_2}+\frac{le^{u\left( M_1-i-1 \right)b_C}}{i+1} \right)}\\& -\sum_{i=M_1-1}^{M_2-2}{{N-1 \choose i} x^i\left( 1-x \right) ^{N-1-i}}\frac{c+le^{u\left( M_1-i-1 \right)b_C}}{i+1}\\ &-\sum_{i=0}^{M_1-2}{{N-1 \choose i} x^i\left( 1-x \right) ^{N-1-i}}\left( \frac{c}{M_1}+e^{u\left( M_1-i-1 \right)b_D} \right), \end{align*}$
(2.6) $\begin{align*}\label{eq6} f_D\left( x \right) =&\sum_{i=0}^{N-1}{{N-1 \choose i} x^i\left( 1-x \right) ^{N-1-i}\varOmega _D\left( i \right)}\\ =&\sum_{i=0}^{N-1}{{N-1 \choose i} x^i\left( 1-x \right) ^{N-1-i}}\left( \begin{array}{c} H\left( i-M_1 \right)b_D -\frac{le^{u\left( M_1-i \right)b_C}}{i+1}H\left( i-M_1 \right)\\ -e^{u\left( M_1-i \right)b_D}H\left( 1-H\left( i-M_1 \right) \right)\\\end{array} \right) \\ =&\sum_{i=M_1}^{N-1}{{N-1 \choose i} x^i\left( 1-x \right) ^{N-1-i}}b_D-\sum_{i=M_1}^{N-1}{{N-1 \choose i} x^i\left( 1-x \right) ^{N-1-i}}\frac{le^{u\left( M_1-i \right)b_C}}{i+1}\\ & -\sum_{i=0}^{M_1-1}{{N-1 \choose i} x^i\left( 1-x \right) ^{N-1-i}}e^{u\left( M_1-i \right)b_D}. \end{align*}$
2.3 Aspiration-Fermi 混合机制下的演化动力学
这部分我们首先回顾 Aspiration 更新规则[36 40] 和 PW-Fermi 更新规则[42 45] , 然后通过线性耦合的方式构建 Aspiration-Fermi 混合更新规则, 运用平均动力学 (mean dynamics)[52 ] 原理来建立该混合机制下的演化动力学模型.
2.3.1 Aspiration 更新规则
Aspiration更新规则是将个体的期望收益 $ f_C(x) $ $ f_D(x) $ $ \alpha $ $ X $ $ C $ $ D $
(2.7) $\begin{equation}\label{eq7} \rho^A _{CD} =\frac{1}{1+e^{-\omega \left( \alpha -f_C\left( x \right) \right)}}, \end{equation}$
而策略 $ D $ $ C $
(2.8) $\begin{equation}\label{eq8} \rho^A _{DC} =\frac{1}{1+e^{-\omega \left( \alpha -f_D\left( x \right) \right)}}, \end{equation}$
2.3.2 PW-Fermi 更新规则
与 Aspiration 更新规则不同, PW-Fermi 更新规则是将个体的期望收益与其邻居的期望收益进行比较, 体现个体的客观性并兼顾考虑博弈环境. 在该规则下, 焦点个体 $ X $ $ C $ $ D $
(2.9) $\begin{equation}\label{eq9} \rho^F _{CD} =\frac{1}{1+e^{-\frac{1}{\kappa}\left( f_D\left( x \right) -f_C\left( x \right) \right)}}, \end{equation} $
而策略 $ D $ $ C $
(2.10) $\begin{equation}\label{eq10} \rho^F _{DC} =\frac{1}{1+e^{-\frac{1}{\kappa}\left( f_C\left( x \right) -f_D\left( x \right) \right)}}, \end{equation}$
其中 $ \kappa $ [42 45] . 即: 高收益个体的策略更易被采纳, 但低收益个体的策略并非完全不可能被采用. 当 $ \kappa \rightarrow 0 $ $ \kappa \rightarrow \infty $
2.3.3 Aspiration-Fermi 混合机制下的演化动力学
综合 Aspiration 更新规则与 PW-Fermi 更新规则的特点, 我们建立一种命名为 Aspiration-Fermi 混合更新规则. 在该混合更新规则下, 焦点个体 $ X $ $ C $ $ D $
(2.11) $\begin{equation}\label{eq11} \rho^{AF}_{CD} =\frac{\theta}{1+e^{-\omega \left( \alpha -f_C\left( x \right) \right)}}+\frac{1-\theta}{1+e^{-\frac{1}{\kappa}\left( f_D\left( x \right) -f_C\left( x \right) \right)}}, \end{equation}$
同样, 策略 $ D $ $ C $
(2.12) $\begin{equation}\label{eq12} \rho^{AF}_{DC} =\frac{\theta}{1+e^{-\omega \left( \alpha -f_D\left( x \right) \right)}}+\frac{1-\theta}{1+e^{-\frac{1}{\kappa}\left( f_C\left( x \right) -f_D\left( x \right) \right)}}, \end{equation} $
其中混合系数 $ \theta \in \left[ 0,1 \right] $ . 特别地, 当 $ \theta=0 $ $ \theta=1 $
由于平均动力学 (mean dynamics) [52 ] 描述某个策略在群体中占比的变化率为从其他策略转为该策略的个体占比与从该策略转移到其他策略的个体占比之差, 运用该原理, 我们建立如下 Aspiration-Fermi 混合机制下的演化动力学来刻画 GMNSG 模型中合作策略占比 $ x $
关于系统 (2.13) 的平衡点分析, 特别地, 当 $ x=0 $ $ f_C(0)=f_D(0)=0 $ $ =\frac{\theta}{1+e^{-\omega \alpha}}+\frac{1-\theta}{2}\geq \frac{\theta}{2}+\frac{1-\theta}{2} \geq \frac{1}{2} \neq 0 $ . 同理, 当 $ x=1 $ $ f_C(1)=f_D(1)=0 $ $ =-\left(\frac{\theta}{1+e^{-\omega \alpha}}+\frac{1-\theta}{2}\right) \leq -\left(\frac{\theta}{2}+\frac{1-\theta}{2}\right) \leq -\frac{1}{2} \neq 0 $ . 故 $ x=0 $ $ x=1 $
3 仿真结果与分析
这部分通过数值仿真来探究 Aspiration-Fermi 混合机制下 GMNSG 的演化动力学对合作行为的影响, 同时我们将 GNSG[25 ] 和 MNSG[29 ] 模型与我们构建的 GMNSG 模型进行对比分析. 为了便于仿真, 我们假设 $ b_D=\lambda b_C $ $ \lambda \in \left[ 0,1 \right] $
首先, 选取基本参数 $ N=100 $ $ b_C=10 $ $ c=5 $ $ M_1=10 $ $ M_2=50 $ $ l=0.2 $ $ u=3 $ $ \kappa =3 $ $ \omega =1 $ $ \alpha =1 $ $ \lambda =0.8 $ $ \theta $ 图 1 ). 该图说明, GMNSG 模型在 $ \theta =0.99 $ $ \theta =0 $ $ \theta =1 $
图 1
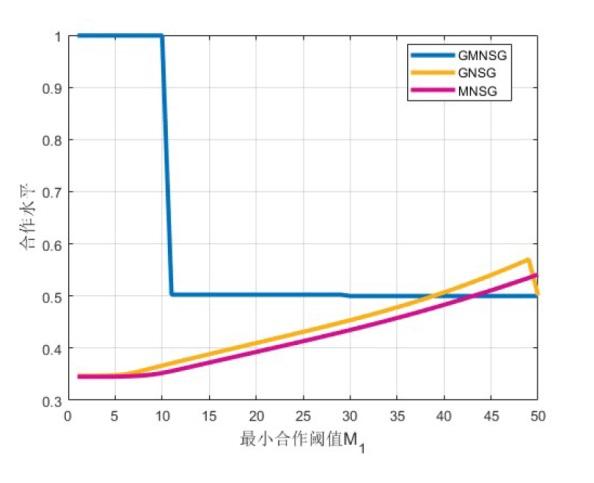
图 2 给出了不同最小合作阈值 $ M_1 $ $ M_1\leqslant 10 $ $ M_1>10 $ $ M_1\leqslant 40 $
图 2
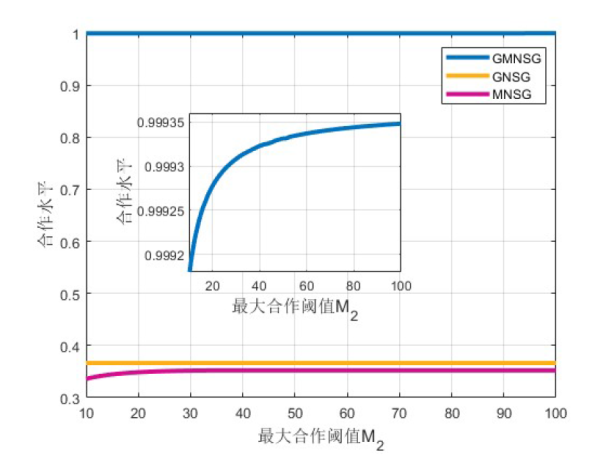
图 3 给出了不同最大合作阈值 $ M_2 $
图 3
图 4 给出了不同合作者收益 $ b_C $ $ b_C $ $ b_C $
图 4
图 4
收益 $ b_C $
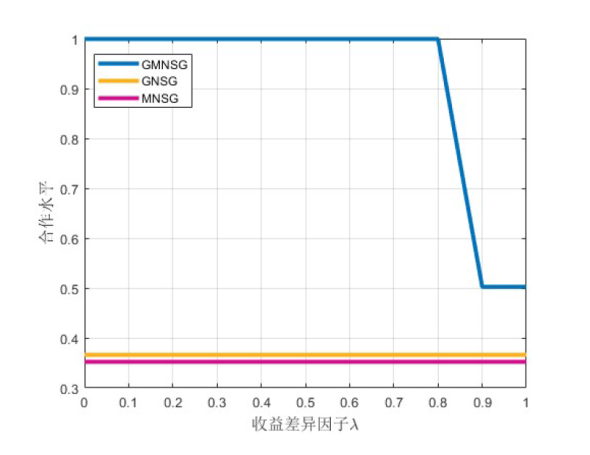
图 5 给出了不同收益差异因子 $ \lambda $ $ \lambda \in [0.0,0.8] $ $ \lambda =1 $
图 5
图 6 给出了不同成本 $ c $
图 6
图 7 给出了不同时间成本因子 $ u $ $ u $
图 7
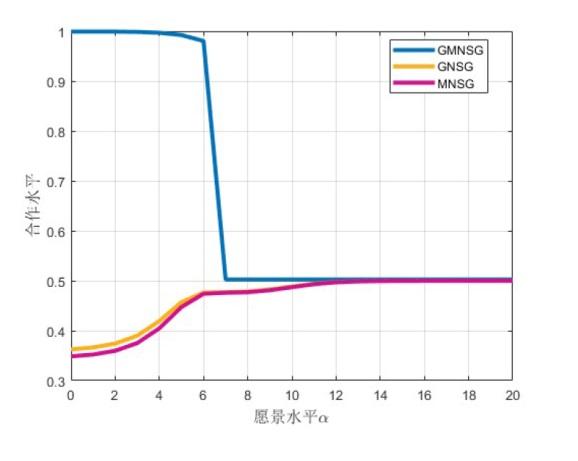
图 8 给出了不同愿景水平 $ \alpha $ $ \alpha $ $ \alpha $ $ \alpha $
图 8
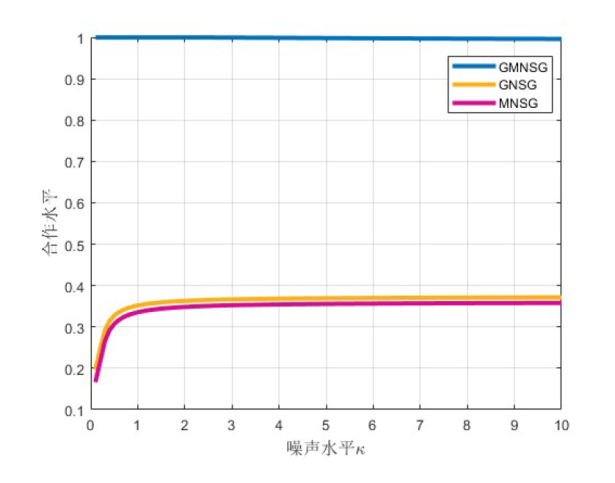
图 9 给出了不同噪声水平 $ \kappa $
图 9
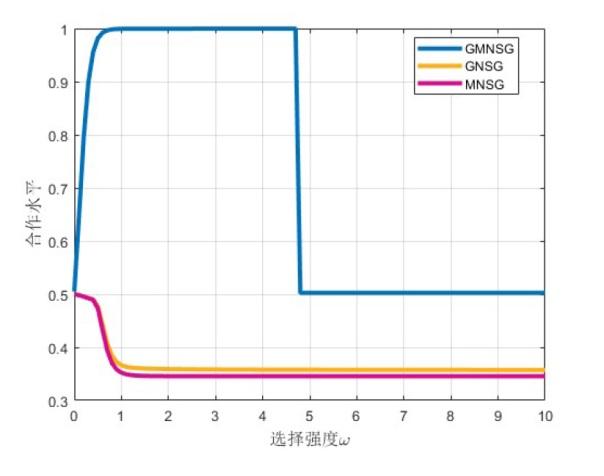
图 10 给出了不同选择强度 $ \omega $
图 10
4 结论
本文从收益的异质性和时间偏好指数贴现的视角出发, 将传统的 $ N $ $ N $
研究表明: 具有异质收益和非线性时间成本的双阈值 $ N $
参考文献
View Option
[1]
Milinski M Tit-for-tat in sticklebacks and the evolution of cooperation
Nature , 1997 , 325 6103 ): 433 -435
DOI:10.1038/325433a0
[本文引用: 1]
[2]
Sinervo B Clobert J Morphs, dispersal behavior, genetic similarity, and the evolution of cooperation
Science , 2003 , 300 5627 ): 1949 -1951
PMID:12817150
Genetic similarity owing to kin relationship is often invoked to explain the evolution of social cooperation. In this study, male color morphs of side-blotched lizards settle nonrandomly with respect to genetic similarity. Blue morphs tend to settle in close proximity to other blue morphs with high genetic similarity. Blue neighbors have three times the average fitness of blue males lacking such neighbors. Conversely, genetically similar males depress fitness of the orange morph. Moreover, orange males are hyperdispersed with respect to genetic similarity. Pedigree and dispersal data show that genetically similar blue neighbors are not kin. Instead, conditions for the evolution of dispersal and cooperation are promoted by an emergent property of the morph locus that increases genetic similarity within morphs: genome-wide correlational selection links many traits to the morph locus, including settlement behavior.
[3]
Bshary R Grutter A S Image scoring and cooperation in a cleaner fish mutualism
Nature Communication , 2006 , 441 7096 ): 975 -978
[4]
Tilman A R Plotkin J B Akçay E Evolutionary games with environmental feedbacks
Nature Communication , 2020 , 11 : Art 915
[5]
Wang C Feng T J Li C et al . Evolutionary stability in an eco-evolutionary game dynamics with density dependence
Chaos, Solitons and Fractals , 2023 , 168 113141
DOI:10.1016/j.chaos.2023.113141
URL
[本文引用: 1]
[7]
Nowak M A Five rules for the evolution of cooperation
Science , 2006 , 314 5805 ): 1560 -1563
DOI:10.1126/science.1133755
PMID:17158317
Cooperation is needed for evolution to construct new levels of organization. Genomes, cells, multicellular organisms, social insects, and human society are all based on cooperation. Cooperation means that selfish replicators forgo some of their reproductive potential to help one another. But natural selection implies competition and therefore opposes cooperation unless a specific mechanism is at work. Here I discuss five mechanisms for the evolution of cooperation: kin selection, direct reciprocity, indirect reciprocity, network reciprocity, and group selection. For each mechanism, a simple rule is derived that specifies whether natural selection can lead to cooperation.
[8]
Rand D G Nowak M A Human cooperation
Trends in Cognitive Sciences , 2013 , 17 413 -425
DOI:10.1016/j.tics.2013.06.003
PMID:23856025
Why should you help a competitor? Why should you contribute to the public good if free riders reap the benefits of your generosity? Cooperation in a competitive world is a conundrum. Natural selection opposes the evolution of cooperation unless specific mechanisms are at work. Five such mechanisms have been proposed: direct reciprocity, indirect reciprocity, spatial selection, multilevel selection, and kin selection. Here we discuss empirical evidence from laboratory experiments and field studies of human interactions for each mechanism. We also consider cooperation in one-shot, anonymous interactions for which no mechanisms are apparent. We argue that this behavior reflects the overgeneralization of cooperative strategies learned in the context of direct and indirect reciprocity: we show that automatic, intuitive responses favor cooperative strategies that reciprocate. Copyright © 2013 Elsevier Ltd. All rights reserved.
[10]
Smith J M Evolution and the Theory of Games . Cambridge : Cambridge University Press , 1982
[本文引用: 1]
[11]
Weibull J W Evolutionary Game Theory . Cambridge : MIT Press , 1995
[12]
Hofbauer J Sigmund K Evolutionary Games and Population Dynamics . Cambridge : Cambridge University Press , 1998
[13]
Nowak M A Evolutionary Dynamics . Cambridge : Harvard University Press , 2006
[14]
Li A Liu Y Y Wang L et al . Evolution of cooperation on temporal networks
Nature Communication , 2020 , 11 : Art 2259
[15]
Pi J X Yang H Yang G H Evolutionary dynamics of cooperation in $N$ - person snowdrift games with peer punishment and individual disguise
Physica A , 2022 , 592 126839
DOI:10.1016/j.physa.2021.126839
URL
[16]
Zhang Q C X Shu L Jiang B C Moran process in evolutionary game dynamics with interval payoffs and its application
Applied Mathematics and Computation , 2023 , 446 127875
DOI:10.1016/j.amc.2023.127875
URL
[本文引用: 1]
[17]
Tang W Wang C Pi J X et al . Cooperative emergence of spatial public goods games with reputation discount accumulation
New Journal of Physics , 2024 , 26 1 ): Art 013017
DOI:10.1088/1367-2630/ad17da
To address issues like the tragedy of the commons, reputation mechanisms prove effective in promoting the emergence of cooperative behavior in social dilemmas. Previous research assumed that the increment of reputation is a fixed constant, however, the historical behavior of individuals with time preferences affects their reputation fluctuations on different scales. Inspired by this, we propose a framework for spatial public goods game that incorporates a reputation discount accumulation model with time preferences. In this model, players are classified as either long-sighted players or short-sighted players based on the significance of their historical behavior. Compared with short-sighted players, long-sighted players are more concerned with the impact of historical behaviors on the next game. Simulation results show that long-sighted cooperative players can resist the invasion of short-sighted defectors, and short-sighted defection strategies are eventually replaced by long-sighted cooperative strategies. This indicates that a higher discount factor facilitates the generation and maintenance of cooperation.
[18]
Wang C Tang W Pi J X The stability of dynamic $n$ - person Cournot games with strategic adjustment costs
Chaos Solitons Fractals , 2024 , 179 114409
DOI:10.1016/j.chaos.2023.114409
URL
[19]
Yang B L Yang G H Dynamics of cooperative evolution with leader-follower hierarchy under information uncertainty in two-layer grid networks
Applied Mathematics and Computation , 2026 , 510 129686
DOI:10.1016/j.amc.2025.129686
URL
[本文引用: 1]
[20]
Fang X Chen X J Evolutionary dynamics of trust in the $N$ - player trust game with individual reward and punishment
The European Physical Journal , 2021 , 94 176
DOI:10.1140/epjb/s10051-021-00185-w
[本文引用: 1]
[21]
Ma X J Quan J Wang X J Effect of reciprocity mechanisms on evolutionary dynamics in feedback-evolving games
Nonlinear Dynamics , 2024 , 112 709 -729
DOI:10.1007/s11071-023-09052-y
[22]
Zheng D F Yin H P et al . Cooperative behavior in a model of evolutionary snowdrift games with $N$ - person interactions
EPL , 2007 , 80 18002
DOI:10.1209/0295-5075/80/18002
URL
[23]
Souza M O Pacheco J M Santos F C Evolution of cooperation under $N$ - person snowdrift games
Journal of Theoretical Biology , 2009 , 260 4 ): 581 -588
DOI:10.1016/j.jtbi.2009.07.010
PMID:19616013
[本文引用: 2]
In the animal world, performing a given task which is beneficial to an entire group requires the cooperation of several individuals of that group who often share the workload required to perform the task. The mathematical framework to study the dynamics of collective action is game theory. Here we study the evolutionary dynamics of cooperators and defectors in a population in which groups of individuals engage in N-person, non-excludable public goods games. We explore an N-person generalization of the well-known two-person snowdrift game. We discuss both the case of infinite and finite populations, taking explicitly into consideration the possible existence of a threshold above which collective action is materialized. Whereas in infinite populations, an N-person snowdrift game (NSG) leads to a stable coexistence between cooperators and defectors, the introduction of a threshold leads to the appearance of a new interior fixed point associated with a coordination threshold. The fingerprints of the stable and unstable interior fixed points still affect the evolutionary dynamics in finite populations, despite evolution leading the population inexorably to a monomorphic end-state. However, when the group size and population size become comparable, we find that spite sets in, rendering cooperation unfeasible.
[24]
Xu M Zheng D F Xu C et al . Cooperative behavior in $N$ - person evolutionary snowdrift games with punishment
Physica A , 2015 , 424 322 -329
DOI:10.1016/j.physa.2015.01.029
URL
[25]
郑月龙 , 张卫国 . 时间成本、多人雪堆博弈与合作演化分析研究
系统科学与数学 , 2016 , 36 11 ): 1933 -1944
DOI:10.12341/jssms12962
[本文引用: 4]
在全混合群体下, 从现有雪堆模型抑制合作的不足出发, 建立一个考虑时间成本的更一般化的多人雪堆模型, 对多人合作的演化动态进行了分析. 结果表明: 临界值~$M$ 的存在使系统呈现~U 型的合作动态, 存在一个不稳定均衡点将其划分为两个吸引盆, 其规模越大集体合作协调越困难, 群体规模亦对群体合作行为产生抑制作用, 时间成本可通过放大代理人的损益变量来影响代理人的决策行为, 其与收益成本比对合作行为涌现均发挥积极作用, 由于收益成本比相对固定, 时间成本可替代其成为抵消上述抑制合作的因素的主要力量, 进而使多人合作行为的涌现成为可能.
Zheng Y L Zhang W G Time cost $N$ - person snowdrift game and cooperative evolution
Journal of Systems Science and Mathematical Science , 2016 , 36 11 ): 1933 -1944
[本文引用: 4]
[26]
Li M Y Kang H W Sun X P et al . Replicator dynamics of public goods game with tax-based punishment
Chaos, Solitons and Fractals , 2022 , 164 112747
DOI:10.1016/j.chaos.2022.112747
URL
[27]
Pi J X Yang G H Yang H et al . Stochastically stable equilibria for evolutionary snowdrift games with time costs
Physica A , 2022 , 604 127927
DOI:10.1016/j.physa.2022.127927
URL
[本文引用: 1]
[29]
Pi J X Yang G H Wang C et al . Evolutionary dynamics of $N$ - person snowdrift game with two thresholds in well-mixed and structured populations
Chaos Solitons Fractals , 2024 , 180 114593
DOI:10.1016/j.chaos.2024.114593
URL
[本文引用: 4]
[30]
叶德珠 , 王聪 , 李东辉 . 行为经济学时间偏好理论研究进展
经济学动态 , 2010 , (4 ): 99 -103
[本文引用: 2]
Ye D Z Wang C Li D H Research progress on the time preference theory in behavioral economics
Economic Perspectives , 2010 , (4 ): 99 -103
[本文引用: 2]
[31]
何嘉梅 , 黄希庭 . 时间贴现的性质与脑机制
心理科学进展 , 2009 , 17 1 ): 98 -105
[本文引用: 1]
时间贴现是指个人对事件的价值量估计随着时间的流逝而下降的心理现象,它是行为选择理论的一个重要组成部分。着重介绍了时间贴现的数学模型(指数模型、双曲线模型族、非双曲线模型)、时间贴现现象和概率贴现现象的联系、延迟兑现与提前兑现时间贴现不对称现象及其理论解释,还讨论了时间贴现现象的神经机制研究。提出了时间贴现未来研究的几个主要问题
He J M Huang X T The property and neural mechanism of temporal discounting
Advances in Psychological Science , 2009 , 17 1 ): 98 -105
[本文引用: 1]
[32]
王先甲 , 夏可 . 多人雪堆演化博弈在愿景驱动规则下的扩展平均丰度函数
系统工程理论与实践 , 2019 , 39 5 ): 1128 -1136
DOI:10.12011/1000-6788-2018-1553-09
[本文引用: 2]
随着博弈理论的深入研究,演化博弈模型在许多社会现象和经济问题的分析中得到了广泛应用.演化博弈模型将策略更新规则引入状态转移方程,得到相应的马尔可夫链,从而研究种群演化状态.当此马尔可夫链无吸收态时,采用平均丰度函数来研究种群演化状态.采用策略更新规则中的愿景驱动规则,通过分析马尔可夫链的平稳分布导出了扩展平均丰度函数.同时,通过将多人演化博弈模型应用于雪堆演化博弈中,得到了多人雪堆演化博弈模型的扩展平均丰度函数.采用数字分析的方式,计算分析了相应参数对平均丰度函数的影响,结合具体案例研究了参数变化如何影响企业在博弈中的行为.研究表明可以通过改变相关参数来提高合作者的占比,这一结论为在实际应用中如何调控相应参数以促进合作指出了方向.
Wang X J Xia K Extended average abundance function of multi-player snowdrift evolutionary game under aspiration driven rule
Systems Engineering-Theory & Practice , 2019 , 39 5 ): 1128 -1136
[本文引用: 2]
[33]
Nowak M A Sasaki A Taylor C et al . Emergence of cooperation and evolutionary stability in finite populations
Nature , 2004 , 428 6983 ): 646 -650
DOI:10.1038/nature02414
[本文引用: 1]
[35]
Chen X J Wang L Promotion of cooperation induced by appropriate payoff aspirations in a small-world networked game
Physical Review E , 2008 , 77 017103
DOI:10.1103/PhysRevE.77.017103
URL
[本文引用: 1]
[36]
Liu Y Chen X J Wang L et al . Aspiration-based learning promotes cooperation in spatial prisoner's dilemma games
EPL , 2011 , 94 6 ): Art 60002
DOI:10.1209/0295-5075/94/60002
URL
[本文引用: 1]
[37]
Chen Y S Yang H X Guo W Z Aspiration-induced dormancy promotes cooperation in the spatial Prisoner's dilemma games
Physica A , 2017 , 469 625 -630
DOI:10.1016/j.physa.2016.11.082
URL
[38]
Płatkowski T Aspiration-based full cooperation in finite systems of players
Applied Mathematics and Computation , 2015 , 251 46 -54
DOI:10.1016/j.amc.2014.11.054
URL
[39]
王先甲 , 刘佳 . 具有外部性的合作博弈问题中的稳定的联盟结构
系统工程理论与实践 , 2018 , 38 5 ): 1173 -1182
DOI:10.12011/1000-6788(2018)05-1173-10
传统的合作博弈问题中,联盟的收益只受到联盟中参与者行为的影响,与其他参与者形成的联盟无关.而在具有外部性影响的环境中,联盟的收益不仅与联盟中参与者行为有关,而且还受到其他参与者形成联盟的影响.本文研究具有外部性的合作博弈问题,分析外部性环境对参与者行为的影响.引入划分函数来描述该合作博弈问题中联盟的收益,提出稳定的联盟结构的概念来描述参与者形成联盟的形式,并说明其存在性.然后通过研究划分函数的性质来说明联盟结构是稳定的充分条件.最后设计演化算法来寻找稳定的联盟结构.本文得到如下结论:对于一个任意的联盟结构,若以它为基础可以把联盟结构集合分为多个部分且每一部分满足一定的性质,则这个联盟结构是稳定的.
Wang X J Liu J Stable coalition structures in cooperative game with externalities
Systems Engineering Theory & Practice , 2018 , 38 5 ): 1173 -1182
[40]
Xia K Average abundance function of multi-player threshold public goods without initial endowment evolutionary game model under differential aspiration levels and redistribution mechanism
Chaos, Solitons and Fractals , 2021 , 142 110490
DOI:10.1016/j.chaos.2020.110490
URL
[本文引用: 1]
[41]
Wang Q Chen X J He N R et al . Evolutionary dynamics of population games with an Aspiration-Based learning rule
IEEE Transactions on Neural Networks and Learning Systems , 2025 , 36 5 ): 8387 -8400
DOI:10.1109/TNNLS.2024.3439372
URL
[本文引用: 1]
[43]
Traulsen A Pacheco J M Nowak M A Pairwise comparison and selection temperature in evolutionary game dynamics
Journal of Theoretical Biology , 2007 , 246 522 -529
PMID:17292423
Recently, the frequency-dependent Moran process has been introduced in order to describe evolutionary game dynamics in finite populations. Here, an alternative to this process is investigated that is based on pairwise comparison between two individuals. We follow a long tradition in the physics community and introduce a temperature (of selection) to account for stochastic effects. We calculate the fixation probabilities and fixation times for any symmetric 2 x 2 game, for any intensity of selection and any initial number of mutants. The temperature can be used to gauge continuously from neutral drift to the extreme selection intensity known as imitation dynamics. For some payoff matrices the distribution of fixation times can become so broad that the average value is no longer very meaningful.
[44]
Liu R R Rong Z H et al . Effects of diverse inertia on scale-free-networked prisoner's dilemma games
Europhysics Letters , 2010 , 91 2 ): Art 20002
DOI:10.1209/0295-5075/91/20002
URL
[45]
Nagashima K Tanimoto J A stochastic Pairwise Fermi rule modified by utilizing the average in payoff differences of neighbors leads to increased network reciprocity in spatial prisoner's dilemma games
Applied Mathematics and Computation , 2019 , 361 661 -669
DOI:10.1016/j.amc.2019.05.034
[本文引用: 3]
In a 2 x 2 prisoner's dilemma (PD) game, network reciprocity is one of the mechanisms for increasing social viscosity, which leads to a cooperative equilibrium. The Pairwise Fermi (PW-Fermi) rule has been accepted as an updating protocol, as its stochasticity is similar to the real-world human decision-making process. In this paper, we elucidated a modification to the PW-Fermi rule by utilizing the averaged payoff difference instead of the simple payoff difference between a focal agent and their neighbors. This led to a significantly enhanced level of network reciprocity. The mechanism of this enhancement is clarified by discussing the concepts of the enduring period (END) and the expanding period (EXP). (C) 2019 Elsevier Inc.
[46]
Liu X S He M F Pan Q H et al . Aspiration promotes cooperation in the prisoner's dilemma game with the imitation rule
Physical Review E , 2016 , 94 012124
DOI:10.1103/PhysRevE.94.012124
URL
[本文引用: 2]
[48]
Wang X J Gu C L Lv S J et al . Evolutionary game dynamics of combining the Moran and imitation processes
Chinese Physics B , 2019 , 28 2 ): 94 -105
[本文引用: 1]
[49]
Hong L J Geng Y N Shi L et al . Average payoff-driven or imitation? A new evidence from evolutionary game theory in finite populations
Applied Mathematics and Computation , 2021 , 394 125784
DOI:10.1016/j.amc.2020.125784
URL
[50]
Gao H Y Wang J Xia C Y et al . Cooperation dynamics based on reputation in the mixed population with two species of strategists
Applied Mathematics and Computation , 2021 , 410 126433
DOI:10.1016/j.amc.2021.126433
URL
[本文引用: 1]
[51]
Hauert C Michor F Nowak M A et al . Synergy and discounting of cooperation in social dilemmas
Journal of Theoretical Biology , 2006 , 239 2 ): 195 -202
DOI:10.1016/j.jtbi.2005.08.040
PMID:16242728
[本文引用: 1]
The emergence and maintenance of cooperation by natural selection is an enduring conundrum in evolutionary biology, which has been studied using a variety of game theoretical models inspired by different biological situations. The most widely studied games are the Prisoner's Dilemma, the Snowdrift game and by-product mutualism for pairwise interactions, as well as Public Goods games in larger groups of interacting individuals. Here, we present a general framework for cooperation in social dilemmas in which all the traditional scenarios can be recovered as special cases. In social dilemmas, cooperators provide a benefit to the group at some cost, while defectors exploit the group by reaping the benefits without bearing the costs of cooperation. Using the concepts of discounting and synergy for describing how benefits accumulate when more than one cooperator is present in a group of interacting individuals, we recover the four basic scenarios of evolutionary dynamics given by (i) dominating defection, (ii) coexistence of defectors and cooperators, (iii) dominating cooperation and (iv) bi-stability, in which cooperators and defectors cannot invade each other. Generically, for groups of three or more interacting individuals further, more complex, dynamics can occur. Our framework provides the first unifying approach to model cooperation in different kinds of social dilemmas.
[52]
Sandholm W H Population Games and Evolutionary Dynamics . Massachusetts : MIT Press , 2011
[本文引用: 2]
Tit-for-tat in sticklebacks and the evolution of cooperation
1
1997
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Morphs, dispersal behavior, genetic similarity, and the evolution of cooperation
0
2003
Image scoring and cooperation in a cleaner fish mutualism
0
2006
Evolutionary games with environmental feedbacks
0
2020
Evolutionary stability in an eco-evolutionary game dynamics with density dependence
1
2023
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
The nature of human altruism
1
2003
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Five rules for the evolution of cooperation
0
2006
The evolution of human cooperation
1
2019
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
1
1982
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Evolution of cooperation on temporal networks
0
2020
Evolutionary dynamics of cooperation in $N$ -person snowdrift games with peer punishment and individual disguise
0
2022
Moran process in evolutionary game dynamics with interval payoffs and its application
1
2023
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
Cooperative emergence of spatial public goods games with reputation discount accumulation
0
2024
The stability of dynamic $n$ -person Cournot games with strategic adjustment costs
0
2024
Dynamics of cooperative evolution with leader-follower hierarchy under information uncertainty in two-layer grid networks
1
2026
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Evolutionary dynamics of trust in the $N$ -player trust game with individual reward and punishment
1
2021
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Effect of reciprocity mechanisms on evolutionary dynamics in feedback-evolving games
0
2024
Cooperative behavior in a model of evolutionary snowdrift games with $N$ -person interactions
0
2007
Evolution of cooperation under $N$ -person snowdrift games
2
2009
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Cooperative behavior in $N$ -person evolutionary snowdrift games with punishment
0
2015
时间成本、多人雪堆博弈与合作演化分析研究
4
2016
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... 以上为同时考虑异质收益及指数非线性时间成本的双阈值 $ N $ 25 ] 中的考虑时间成本下的单阈值 $ N $ 29 ] 中的双阈值 $ N $
... 这部分通过数值仿真来探究 Aspiration-Fermi 混合机制下 GMNSG 的演化动力学对合作行为的影响, 同时我们将 GNSG[25 ] 和 MNSG[29 ] 模型与我们构建的 GMNSG 模型进行对比分析. 为了便于仿真, 我们假设 $ b_D=\lambda b_C $ $ \lambda \in \left[ 0,1 \right] $
$N$ -person snowdrift game and cooperative evolution
4
2016
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... 以上为同时考虑异质收益及指数非线性时间成本的双阈值 $ N $ 25 ] 中的考虑时间成本下的单阈值 $ N $ 29 ] 中的双阈值 $ N $
... 这部分通过数值仿真来探究 Aspiration-Fermi 混合机制下 GMNSG 的演化动力学对合作行为的影响, 同时我们将 GNSG[25 ] 和 MNSG[29 ] 模型与我们构建的 GMNSG 模型进行对比分析. 为了便于仿真, 我们假设 $ b_D=\lambda b_C $ $ \lambda \in \left[ 0,1 \right] $
Replicator dynamics of public goods game with tax-based punishment
0
2022
Stochastically stable equilibria for evolutionary snowdrift games with time costs
1
2022
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Evolutionary dynamics of $N$ -person snowdrift game
3
2015
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... 人雪堆博弈模型, 其中最小阈值反映合作者完成铲雪的最大成本, 而最大阈值反映最小成本; 并研究了其复制动力学的演化动态, 发现两个阈值的增大都有利于合作的涌现. 在文献[28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... 本文考虑一个具有两个阈值 $ M_1 $ $ M_2 $ $ 1\le M_1\le M_2\le N $ ) 的 $ N $ $ C $ ) 与背叛 ($ D $ ) 为其两个策略, 其中这 $ N $ $ i $ $ 0 \leq i \leq N $ ) 个合作者以及 $ N-i $ $ c $ $ b_C $ $ b_D $ $ b_C \geq b_D $ . 这里, 第一个阈值 $ M_1 $ $ i<M_1 $ $ \frac{c}{M_1} $ $ e^{u\left( M_1-i \right)b_D} $ $ u(u\geq 0) $ $ M_2 $ $ M_1\le i\le M_2 $ $ c $ $ \frac{c}{i} $ $ b_C $ $ b_D $ $ le^{u\left( M_1-i \right)b_C}, 0\leqslant l\leqslant 1 $ . 当 $ M_2<i\le N $ [28 ] , 即每个合作者最少需要付出成本 $ \frac{c}{M_2} $ $ b_C $ $ b_D $ $ le^{u\left( M_1-i \right)b_C} $
Evolutionary dynamics of $N$ -person snowdrift game with two thresholds in well-mixed and structured populations
4
2024
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... [29 ]进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... 以上为同时考虑异质收益及指数非线性时间成本的双阈值 $ N $ 25 ] 中的考虑时间成本下的单阈值 $ N $ 29 ] 中的双阈值 $ N $
... 这部分通过数值仿真来探究 Aspiration-Fermi 混合机制下 GMNSG 的演化动力学对合作行为的影响, 同时我们将 GNSG[25 ] 和 MNSG[29 ] 模型与我们构建的 GMNSG 模型进行对比分析. 为了便于仿真, 我们假设 $ b_D=\lambda b_C $ $ \lambda \in \left[ 0,1 \right] $
行为经济学时间偏好理论研究进展
2
2010
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Research progress on the time preference theory in behavioral economics
2
2010
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
时间贴现的性质与脑机制
1
2009
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
The property and neural mechanism of temporal discounting
1
2009
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
多人雪堆演化博弈在愿景驱动规则下的扩展平均丰度函数
2
2019
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... –32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Extended average abundance function of multi-player snowdrift evolutionary game under aspiration driven rule
2
2019
... 合作的演化在自然界[1 5 ] 和人类社会 [6 9 ] 中普遍存在, 演化博弈理论作为研究这一现象的重要范式 [10 19 ] , 通过构建多人博弈框架拓展了经典模型的群体动态分析能力[20 29 ] . 其中, $N$ [23 ] 提出了合作者最小阈值的 $N$ [25 ] 将线性时间成本引入到文献[23 ]的模型中, 并通过复制动力学发现线性时间成本的增大有利于合作的涌现. 基于文献[25 ] 的模型, Pi 等 [27 ] 研究了在阈值和线性时间成本的正向影响下均衡的随机稳定性, 并运用复制动力学得到阈值、收益和线性时间成本的增大也会促进合作. 此外, 考虑到参与公共事业的成本不会随着合作者数量的增加而无限降低, Sui 等[28 ] 提出了具有两个阈值的 $N$ 28 ] 的模型上,Pi 等[29 ] 进一步研究两个阈值的 $N$ [30 ] 和心理[31 ] 等领域都将时间偏好通过指数形式进行贴现, 这样能更好的反映时间对人的现实和心理变化进而影响其决策. 同时, 不同于上述未考虑异质收益的文献, 王先甲和夏可在文献[32 ] 中将合作者的收益和背叛者的收益进行异质分析, 结果表明合作者和背叛者在拥有不同的收益下更有利于促进合作. 然而, 据我们查阅相关文献, 考虑异质收益和指数非线性时间成本的双阈值雪堆博弈相关模型尚未公开报道. 因此受文献[30 32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
... –32 ] 启发, 我们将构建具有异质收益、指数非线性时间成本和双阈值的 $N$
Emergence of cooperation and evolutionary stability in finite populations
1
2004
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
Evolutionary dynamics on graphs
1
2005
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
Promotion of cooperation induced by appropriate payoff aspirations in a small-world networked game
1
2008
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
Aspiration-based learning promotes cooperation in spatial prisoner's dilemma games
1
2011
... 这部分我们首先回顾 Aspiration 更新规则[36 40 ] 和 PW-Fermi 更新规则[42 45 ] , 然后通过线性耦合的方式构建 Aspiration-Fermi 混合更新规则, 运用平均动力学 (mean dynamics)[52 ] 原理来建立该混合机制下的演化动力学模型. ...
Aspiration-induced dormancy promotes cooperation in the spatial Prisoner's dilemma games
0
2017
Aspiration-based full cooperation in finite systems of players
0
2015
具有外部性的合作博弈问题中的稳定的联盟结构
0
2018
Stable coalition structures in cooperative game with externalities
0
2018
Average abundance function of multi-player threshold public goods without initial endowment evolutionary game model under differential aspiration levels and redistribution mechanism
1
2021
... 这部分我们首先回顾 Aspiration 更新规则[36 40 ] 和 PW-Fermi 更新规则[42 45 ] , 然后通过线性耦合的方式构建 Aspiration-Fermi 混合更新规则, 运用平均动力学 (mean dynamics)[52 ] 原理来建立该混合机制下的演化动力学模型. ...
Evolutionary dynamics of population games with an Aspiration-Based learning rule
1
2025
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
Evolutionary prisoner's dilemma game on a square lattice
3
1998
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
... 这部分我们首先回顾 Aspiration 更新规则[36 40 ] 和 PW-Fermi 更新规则[42 45 ] , 然后通过线性耦合的方式构建 Aspiration-Fermi 混合更新规则, 运用平均动力学 (mean dynamics)[52 ] 原理来建立该混合机制下的演化动力学模型. ...
... 其中 $ \kappa $ [42 45 ] . 即: 高收益个体的策略更易被采纳, 但低收益个体的策略并非完全不可能被采用. 当 $ \kappa \rightarrow 0 $ $ \kappa \rightarrow \infty $
Pairwise comparison and selection temperature in evolutionary game dynamics
0
2007
Effects of diverse inertia on scale-free-networked prisoner's dilemma games
0
2010
A stochastic Pairwise Fermi rule modified by utilizing the average in payoff differences of neighbors leads to increased network reciprocity in spatial prisoner's dilemma games
3
2019
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
... 这部分我们首先回顾 Aspiration 更新规则[36 40 ] 和 PW-Fermi 更新规则[42 45 ] , 然后通过线性耦合的方式构建 Aspiration-Fermi 混合更新规则, 运用平均动力学 (mean dynamics)[52 ] 原理来建立该混合机制下的演化动力学模型. ...
... 其中 $ \kappa $ [42 45 ] . 即: 高收益个体的策略更易被采纳, 但低收益个体的策略并非完全不可能被采用. 当 $ \kappa \rightarrow 0 $ $ \kappa \rightarrow \infty $
Aspiration promotes cooperation in the prisoner's dilemma game with the imitation rule
2
2016
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
... [46 ]研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
Fixation of strategies with the Moran and Fermi processes in evolutionary games
1
2017
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
Evolutionary game dynamics of combining the Moran and imitation processes
1
2019
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
Average payoff-driven or imitation? A new evidence from evolutionary game theory in finite populations
0
2021
Cooperation dynamics based on reputation in the mixed population with two species of strategists
1
2021
... 此外, 在合作演化的过程中, 策略更新规则在演化动力学中起着至关重要的作用. 最受关注的策略更新规则有 Moran 过程[16 ,33 ,34 ] 、Aspiration 规则[35 41 ] 以及 PW-Fermi 规则 [42 45 ] . 此外, 许多学者将这些更新规则结合起来, 以探索合作的演化 [46 50 ] . 具体地, 2016 年, Liu 等 [46 ] 研究了规模为 $N+M$ $N$ $M$ [47 ] 将 Moran 过程和 Fermi 过程相结合来研究有限种群的演化动力学. 他们规定个体首先使用 Moran 过程进行繁殖, 然后使用 Fermi 过程更新策略, 并发现该混合过程中的扎根时间比仅使用 Fermi 过程时的扎根时间更短. 2019 年, Wang 等 [48 ] 在有限种群中提出了一种将 Moran 过程和模仿过程进行线性耦合的混合更新规则, 发现倾向于选择 Moran 过程有利于促进合作. 简而言之, 从上述研究工作来看, 更新规则的结合对促进合作具有积极作用. ...
Synergy and discounting of cooperation in social dilemmas
1
2006
... 在该 $ N $ $ x $ $ 1-x $ . 对于一个合作者或背叛者, 剩下的 $ N-1 $ [51 ] . 因此, 合作者和背叛者的期望收益 $ f_C(x) $ $ f_D(x) $
2
2011
... 这部分我们首先回顾 Aspiration 更新规则[36 40 ] 和 PW-Fermi 更新规则[42 45 ] , 然后通过线性耦合的方式构建 Aspiration-Fermi 混合更新规则, 运用平均动力学 (mean dynamics)[52 ] 原理来建立该混合机制下的演化动力学模型. ...
... 由于平均动力学 (mean dynamics) [52 ] 描述某个策略在群体中占比的变化率为从其他策略转为该策略的个体占比与从该策略转移到其他策略的个体占比之差, 运用该原理, 我们建立如下 Aspiration-Fermi 混合机制下的演化动力学来刻画 GMNSG 模型中合作策略占比 $ x $